چرخه کربس در گیاهان؛ راهنمای جامع فیزیولوژی میتوکندری، بیوشیمی و مدیریت تغذیه زراعی
چرخه کربس که تحت عناوین چرخه اسید تری کربوکسیلیک (TCA) یا چرخه اسید سیتریک (Citric Acid Cycle) نیز شناخته می شود، قلب تپنده دگرگشت (متابولیسم) گیاهی است. در شرایطی که عموم افراد گیاه را صرفاً به عنوان یک موجود «فتوسنتزکننده» می شناسند، واقعیت فیزیولوژیک این است که بخش عمده ای از سرنوشت عملکرد اقتصادی، تحمل تنش های غیرزیستی (خشکی، شوری و سرما) و سنتز ترکیبات دارویی و متابولیتهای ثانویه در ماتریکس میتوکندری و طی واکنش های هشتگانه چرخه کربس رقم می خورد. این چرخه ماهیتی آمفی بولیک (دوگانه) دارد؛ یعنی هم زمان سوخت لازم برای فسفوریلاسیون اکسیداتیو را تأمین میکند و هم اسکلتهای کربنی اولیه را برای تولید اسیدهای آمینه، پورین ها، پیریمیدین ها و کلروفیل در اختیار سلول قرار می دهد.
جایگاه زیستی چرخه کربس در اکوسیستم سلولی گیاه
در چرخه حیات سلول های گیاهی، کربوهیدرات های تولیدشده در کلروپلاست طی واکنش های فتوسنتزی (مانند ساکارز و گلوکز) باید در اندام های مصرف کننده (Sink) نظیر ریشه ها، بافت های چوبی، جوانه ها و میوه ها به شکل قابل مصرف انرژی آزاد تبدیل شوند. این فرآیند تحت عنوان تنفس سلولی هوازی (Aerobic Cellular Respiration) انجام میگیرد که شامل سه فاز بنیادین است:
- گلیکولیز (Glycolysis): در سیتوزول، جایی که گلوکز شکسته شده و به مولکول ۳-کربنه «پیرووات» تبدیل می شود.
- چرخه کربس (TCA Cycle): در ماتریکس میتوکندری، جایی که گروه های استیل کاملاً اکسید شده و دی اکسید کربن، ATP و حاملهای احیاکننده پرانرژی (NADH و FADH2) تولید می شوند.
- فسفوریلاسیون اکسیداتیو و زنجیره انتقال الکترون (ETC): در چینخوردگی های غشای درونی میتوکندری (کریستاها)، جایی که انرژی ذخیره شده در الکترون ها به جریان انبوه آدنوزین تری فسفات (ATP) بدل می شود.
برخلاف جانوران که ارگانیسمهایی هتروتروف هستند و متابولیسم تنفسی در آنها به شدت ساختاریافته و ثابت است، گیاهان به عنوان موجودات بی حرکت (Sessile) باید متابولیسم میتوکندریایی خود را با نوسانات شدید نور، دما، رطوبت خاک و دسترسی به مواد غذایی تطبیق دهند. از این رو، چرخه کربس در گیاهان یکی از دینامیک ترین شبکه های بیوشیمی در طبیعت به شمار می رود.
گام رابط: کمپلکس پیرووات دهیدروژناز (PDC) و ورود به میتوکندری
پیرووات حاصل از گلیکولیز در سیتوپلاسم قرار دارد. برای ورود به چرخه کربس، ابتدا باید از غشای دوگانه میتوکندری عبور کند. این انتقال توسط ترانسپورترهای اختصاصی غشا انجام می شود. درون ماتریکس میتوکندری، پیرووات با کمپلکس آنزیمی بسیار عظیمی به نام پیرووات دهیدروژناز (Pyruvate Dehydrogenase Complex – PDC) مواجه می شود.
واکنش بیوشیمیایی دکربوکسیلاسیون اکسیداتیو:
Pyruvate+CoA-SH+NAD+→PDCAcetyl-CoA+CO2+NADH+H+
زیرواحدهای آنزیمی و کوفاکتورهای تغذیه ای کمپلکس PDC
کمپلکس PDC از سه آنزیم مجزا تشکیل شده است که هماهنگ با یکدیگر کار می کنند:
- E1 (پیرووات دهیدروژناز): نیازمند کوآنزیم تیامین پیروفسفات (TPP) یا ویتامین B1.
- E2 (دی هیدرولیپوئیل ترانس استیلاز): نیازمند لیپوئیک اسید و کوآنزیم A (مشتق از اسید پانتوتنیک یا ویتامین B5).
- E3 (دی هیدرولیپوئیل دهیدروژناز): نیازمند FAD (مشتق از ریبوفلاوین یا ویتامین B2) و +NAD (مشتق از نیاسین یا ویتامین B3).
فعالیت این آنزیم به حضور کاتیون های دو ظرفیتی به ویژه منیزیم (+Mg2) و منگنز (Mn2) وابسته است. در خاکهای قلیایی و آهکی ایران که جذب ریزمغذی ها با اختلال مواجه است، کمبود این عناصر مستقیماً ورود پیرووات به چرخه کربس را با مانع روبرو کرده و موجب افت تنفس سلولی و تجمع اسیدهای آلی ناقص در سیتوسل می شود.
تشریح تفصیلی مراحل هشتگانه چرخه اسید تری کربوکسیلیک (TCA)
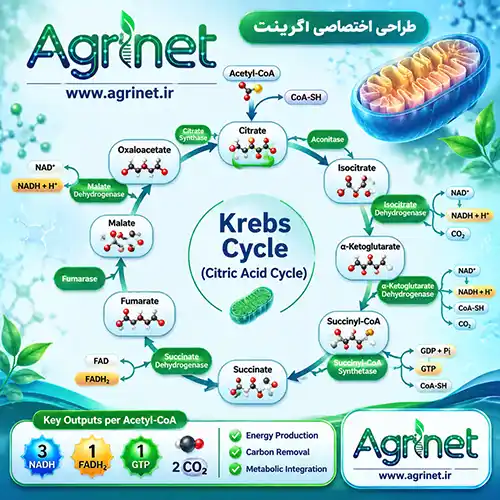
چرخه کربس با ترکیب یک مولکول چهارکربنه به نام اگزالواستات با گروه دوکربنه استیل کوآ آغاز شده و طی هشت مرحله بیوشیمیایی متوالی، دوباره به اگزالواستات ختم می شود تا چرخه بازتولید گردد.
گام اول: تشکیل سیترات (سنتز اسید سیتریک)
- آنزیم: سیترات سنتاز (Citrate Synthase)
- مکانیسم: استیلکوآ (C2) با اگزالواستات (C4) واکنش تراکمی آلدولی میدهد و پیوند تیواستری پرانرژی استیلکوآ هیدرولیز شده، مولکول ششکربنه سیترات به همراه یک مولکول آزاد کوآنزیم A تولید میشود.
- ویژگی بیوشیمیایی: این واکنش بسیار گرمازا (Exergonic) و عملاً در شرایط فیزیولوژیک برگشت ناپذیر (ΔG∘′≈−31.4 kJ/mol) است. بنابراین نقطه کنترل اصلی ورودی چرخه به حساب می آید.
گام دوم: تبدیل سیترات به ایزوسیترات
- آنزیم: آکونیتاز (Aconitase)
- مکانیسم: این آنزیم در ابتدا یک مولکول آب از سیترات حذف کرده و واسطه غیراشباع سیس-آکونیتات را میسازد و سپس با اضافه کردن معکوس مولکول آب، آن را به دی-ایزوسیترات تبدیل میکند.
- نکته حساس فیزیولوژیک: آکونیتاز یک پروتئین دارای کلاستر آهن-گوگرد () است. این آنزیم به شدت نسبت به رادیکالهای آزاد اکسیژن (ROS) حساس بوده و در شرایط تنشهای نوری یا اسمزی سریعاً مهار می شود.
گام سوم: دکربوکسیلاسیون ایزوسیترات و تشکیل آلفا-کتوگلوتارات
- آنزیم: ایزوسیترات دهیدروژناز وابسته به NAD+ (NAD-IDH)
- مکانیسم: ابتدا گروه هیدروکسیل ایزوسیترات اکسید شده و واسطه ناپایدار اگزالوسوکسینات پدید میآید. سپس این مولکول یک مولکول CO2 از دست داده و به اسید پنجکربنه آلفا-کتوگلوتارات (α\alpha-Ketoglutarate) تبدیل میگردد.
- تولید انرژی: در این واکنش اولین مولکول NADH تولید میشود.
- اهمیت ویژه در اگرینت: آلفا-کتوگلوتارات گلوگاه مستقیم پیوند میان متابولیسم کربن و متابولیسم نیتروژن است.
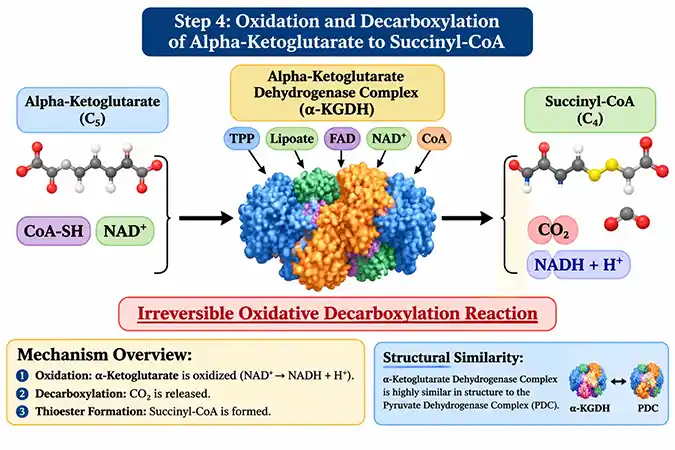
گام چهارم: اکسیداسیون آلفا-کتوگلوتارات به سوکسینیل کوآ
- آنزیم: کمپلکس آلفا-کتوگلوتارات دهیدروژناز (α\alpha-KGDH)
- مکانیسم: این واکنش دکربوکسیلاسیون اکسیداتیو دوم است. ساختار این کمپلکس مشابه کمپلکس پیرووات دهیدروژناز است و نیازمند کوفاکتورهای TPP، اسید لیپوئیک، CoA و +NAD است.
- خروجی: دومین مولکول CO2 آزاد شده و دومین مولکول NADH شکل میگیرد و در نهایت مولکول پرانرژی سوکسینیل کوآ (C4) ساخته می شود.
گام پنجم: فسفوریلاسیون در سطح پیش ماده و تولید سوکسینات
- آنزیم: سوکسینیلکوآ سنتتاز (Succinyl-CoA Synthetase)
- مکانیسم: هیدرولیز پیوند تیواستری سوکسینیلکوآ انرژی کافی برای اتصال گروه فسفات معدنی (Pi) به ADP را فراهم می کند.
- خروجی: تولید مستقیم یک مولکول ATP در گیاهان (برخلاف بافتهای پستانداران که عمدتاً GTP می سازند) و آزاد شدن مولکول چهارکربنه سوکسینات.
گام ششم: اکسیداسیون سوکسینات به فومارات (پیوند مستقیم با زنجیره تنفسی)
- آنزیم: سوکسینات دهیدروژناز (Succinate Dehydrogenase – SDH)
- مکانیسم: دو اتم هیدروژن از سوکسینات برداشته شده و به گروه پروستتیک FAD داده میشود تا FADH2 و مولکول فومارات تولید گردد.
- نکته ساختاری بینظیر: SDH تنها آنزیم چرخه کربس است که در ماتریکس میتوکندری شناور نیست؛ بلکه محکم درون غشای درونی میتوکندری قرار گرفته و دقیقاً همان کمپلکس II از زنجیره انتقال الکترون است!
گام هفتم: آب پوشی فومارات به ال-مالات
- آنزیم: فوماراز (Fumarase یا Fumarate Hydratase)
- مکانیسم: این آنزیم به صورت کاملاً فضایی (Stereospecific) یک مولکول را در سرتاسر پیوند دوگانه ترانس فومارات اضافه میکند و مولکول L-مالات پدید میآید.
گام هشتم: اکسیداسیون ال-مالات و بازسازی اگزالواستات
- آنزیم: مالات دهیدروژناز میتوکندریایی (mMDH)
- مکانیسم: گروه هیدروکسیل مالات اکسید شده و مجدداً مولکول اگزالواستات ساخته میشود. در این مرحله، سومین مولکول NADH از چرخه آزاد می شود.
- ترمودینامیک: هرچند این واکنش از نظر ترمودینامیکی دارای ΔG∘′ مثبت است، اما به دلیل مصرف بسیار سریع اگزالواستات در مرحله اول توسط آنزیم سیترات سنتاز، تعادل واکنش همواره به سمت راست کشیده می شود.
بیلان انرژی و موازنه اتمی تنفس سلولی
به ازای هر مولکول گلوکز واردشده به گلیکولیز، دو مولکول پیرووات ساخته میشود؛ بنابراین چرخه کربس به ازای هر گلوکز دو چرخش کامل انجام می دهد.
| شاخص متابولیکی | در هر چرخش کربس | مجموع حاصل از ۱ مولکول گلوکز (شامل مرحله PDC) |
|---|---|---|
| دیاکسید کربن (CO2) | 2 | 6 مولکول (خروج کامل اتم های کربن گلوکز) |
| مولکول پرانرژی NADH | 3 | 8 مولکول (2در PDC + 6 در کربس) |
| مولکول حامل FADH2 | 1 | 2 مولکول |
| ATP مستقیم (فسفوریلاسیون سوبسترا) | 1 | 2 مولکول |
راندمان معادل سازی انرژی در زنجیره انتقال الکترون (ETC):
بر پایه نسبتهای بیوانرژتیک نوین (P/O Ratios):
- هر مولکول NADH میتوکندریایی پتانسیل تولید حدود ۲.۵ مولکول ATP را دارد.
- هر مولکول FADH2 پتانسیل تولید حدود ۱.۵ مولکول ATP را دارد.
در نتیجه، مجموع انرژی حاصل از اکسیداسیون کامل یک مولکول گلوکز در گیاه عددی بین ۳۰ تا ۳۲ مولکول ATP است که سهم اعظم آن (بیش از ۸۰ درصد) ناشی از فعالیت چرخه کربس و احیای کوآنزیمهاست.
ویژگی های منحصربهفرد چرخه کربس در سلولهای گیاهی
دانش بیوشیمی کلاسیک غالباً مبتنی بر فیزیولوژی جانوری تدریس میشود؛ اما گیاهان دارای پدیده های متابولیکی بی همتایی هستند که تفاوت بنیادین با سلولهای حیوانی دارد:
۱. پیوند حیاتی با متابولیسم جذب نیتروژن (مسیر GS/GOGAT)
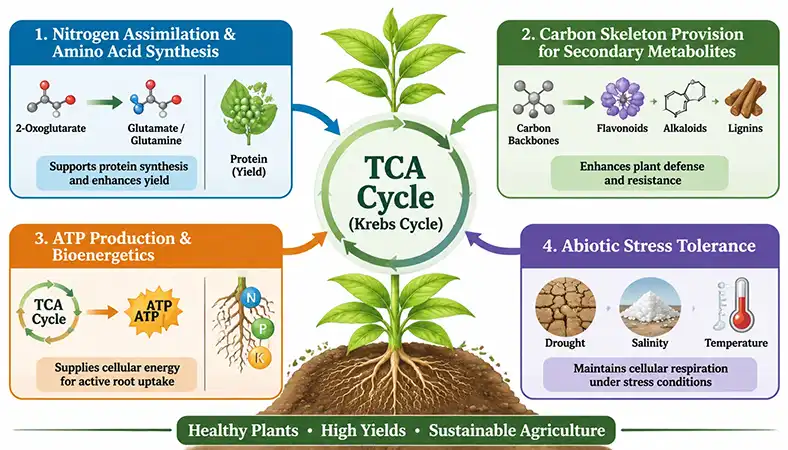
گیاهان نیتروژن معدنی را به شکل نیترات (−) یا آمونیوم (+NH4) از ریشه جذب میکنند. آمونیوم جذبشده به شدت برای سلول سمی است و باید فوراً به اسیدهای آمینه تبدیل شود. آنزیم گلوتامین سنتاز / گلوتامات سنتاز (GS-GOGAT) نیازمند یک دهنده اسکلت کربنی است. این اسکلت کربنی چیزی نیست جز آلفا-کتوگلوتارات که مستقیماً از چرخه کربس خارج میشود. اگر تنفس میتوکندریایی افت کند، گیاه دچار مسمومیت آمونیومی و توقف ساخت پروتئین خواهد شد.
۲. ترشح اسیدهای آلی به ریزوسفر برای آزادسازی فسفر تثبیت شده
یکی از استراتژی های کلیدی گیاهان در خاک های آهکی (نظیر بخش عمده اراضی کشاورزی کشور)، پمپاژ فعال سیترات و مالات از سلولهای ریشه به محیط خاک است. این اسیدهای تری و دیکربوکسیلیک با کلسیم، آهن و آلومینیوم خاک کمپلکس کلاته تشکیل میدهند و پیوندهای نامحلول فسفات را شکسته و فسفر را به فرم قابلجذب گیاه (−H2PO4) تبدیل می کنند.
۳. مسیر اکسیداز جایگزین (Alternative Oxidase – AOX)
گیاهان بر خلاف جانوران دارای یک مسیر تنفسی جانبی هستند که الکترونها را بدون تولید ATP مستقیماً به اکسیژن منتقل میکند. این فرآیند توسط آنزیم AOX انجام می شود. هنگامی که گیاه زیر تنش سرما، گرمای شدید یا سم پاشی قرار می گیرد و زنجیره اصلی انتقال الکترون به دلیل انباشت ROS مسدود می شود، مسیر AOX بار الکتریکی را تخلیه می کند تا چرخه کربس همچنان باز بماند و متابولیت های پایه تولید شوند.
رفتار و دگرگونی های چرخه کربس تحت تنشهای محیطی
گیاه برای تطبیق با تنشهای مختلف محیطی، الگوی فعالیت آنزیمهای چرخه کربس را به شدت بازآرایی میکند:
تنش شوری خاک (NaCl)
شوری شدید موجب ورود مازاد یون سدیم به سلول می شود. خروج سدیم توسط آنتیپورتهای غشایی (مسیر SOS1) شدیداً محتاج انرژی ATP است. بنابراین گیاه در فاز اول شوری، نرخ تنفس میتوکندریایی و چرخه کربس را چند برابر می کند. اما در فاز حاد، تجمع ROS آنزیم حساس آکونیتاز را اکسید و مهار کرده و سنتز سیترات انباشته می شود که گیاه از آن به عنوان یک ترکیب بافرکننده pH سلولی بهره می برد.
تنش خشکی و کم آبی
با بسته شدن روزنهها جهت جلوگیری از تعریق، فتوسنتز متوقف شده و ورود قندهای تازه کاهش می یابد. در این حالت، چرخه کربس نقش محافظتی ایفا می کند؛ گیاه با سوزاندن اسیدهای آمینه ذخیرهای و اسیدهای چرب، واسطه های چرخه را تغذیه کرده و تلاش می کند غلظت پرولین و قندهای الکلی را برای تنظیم اسمزی در سیتوزول بالا نگه دارد.
شرایط غرقابی و هیپوکسی (کمبود اکسیژن خاک)
در آبماندگی و گلآلودگی مزارع، میزان اکسیژن حلشده در آب خاک به صفر میل میکند. از آنجا که اکسیژن گیرنده نهایی الکترون در میتوکندری است، توقف آن موجب انباشت شدید NADH میشود. انباشت NADH آنزیمهای کلیدی چرخه کربس (مانند ایزوسیترات دهیدروژناز و α\alpha-KGDH) را مهار همهجانبه (فیدبک منفی) میکند. سلول ناگزیر به مسیر تخمیر الکلی یا اسید لاکتیک روی میآورد که راندمان انرژی را به تنها ۲ مولکول ATP کاهش داده و موجب کاهش شدید اسیدیته و مرگ سلولی بافت ریشه میگردد.
کاربردهای زراعی و راهکارهای مدیریتی مزرعه بر پایه فیزیولوژی تنفس
چگونه کارشناسان و کشاورزان پیشرو میتوانند از فیزیولوژی چرخه کربس در باغات، مزارع و گلخانهها درآمدزایی و افزایش راندمان خلق کنند؟
۱. استفاده هوشمندانه از کلاتهای اسید آلی (سیترات، فومارات، مالات)
کودهایی که کاتیون های آنها (آهن، روی، کلسیم، مس) با بنیان های اسید آلی نظیر سیترات کلاته شده اند، سازگاری زیستی فوقا لعاده ای با پمپهای غشایی گیاه دارند. این کلاتها به محض ورود به سلول تجزیه شده و بنیان اسید آلی مستقیماً به چرخه کربس ملحق شده و انرژی زیستی گیاه را هدر نمی دهد.
۲. مدیریت ریزمغذی های کلیدی در برنامه کودآبیاری و محلول پاشی
- آهن (Fe) و گوگرد (S): سازنده مراکز Fe-S آنزیم آکونیتاز و سوکسینات دهیدروژناز.
- منیزیم (Mg) و منگنز (Mn): شتابدهنده فعالیت کمپلکس پیرووات دهیدروژناز و ایزوسیترات دهیدروژناز.
- مس (Cu): فعالکننده آنزیم سیتوکروم اکسیداز زنجیره تنفسی برای پذیرش الکترونهای حاصل از کربس.
۳. محلول پاشی اسیدهای آمینه کلیدی در زمان تنش
هنگامی که گیاه در معرض شوکهای گرمایی، سرمازدگی یا شوری قرار دارد، نباید انرژی چرخه کربس صرف سنتز اسیدهای آمینه پایه شود. مصرف ترکیباتی همچون ال-اسید گلوتامیک، پرولین و گلیسین به صورت محلولپاشی برگی، بار متابولیکی را از روی دوش چرخه کربس برمیدارد و اجازه میدهد تمام توان تنفسی گیاه صرف بقا و حفظ اندامهای باردهی شود.
۴. بهینه سازی تهویه و ساختار بستر کشت
ریشه ها بدون اکسیژن قادر به اجرای چرخه کربس نیستند. استفاده از ترکیبات آلی (هیومیک اسید و کمپوست های استاندارد)، شخمزدن اصولی، عدم تردد ماشین آلات سنگین در رطوبت بالا و پرهیز از آبیاریهای غرقابی ممتد، حیاتیترین گامها برای تضمین تنفس سالم ریشه ها به شمار می روند.
چرخه کربس (TCA) در گیاهان فراتر از یک مسیر ساده تولید انرژی در ماتریس میتوکندری است؛ این چرخه به عنوان قلب تپنده متابولیسم گیاهی، چارچوب حیاتی برای پیوند کربن و نیتروژن، سنتز اسیدهای آمینه و پروتئینها و تأمین اسکلتهای کربنی لازم برای تولید متابولیتهای ثانویه و دفاع در برابر تنشهای محیطی (مانند خشکی و شوری) عمل می کند. درک عمیق واکنش های آنزیمی این مسیر از جمله گام های کلیدی مانند دکربوکسیلاسیون های اکسیداتیو، به مهندسان کشاورزی و پژوهشگران این امکان را می دهد تا با بهینه سازی تغذیه گیاه و مدیریت تنشها، بهرهوری و کیفیت محصولات زراعی را در نظامهای نوین کشاورزی ارتقا بخشند.


